Этапы биосинтеза белка: от ДНК до функциональной молекулы
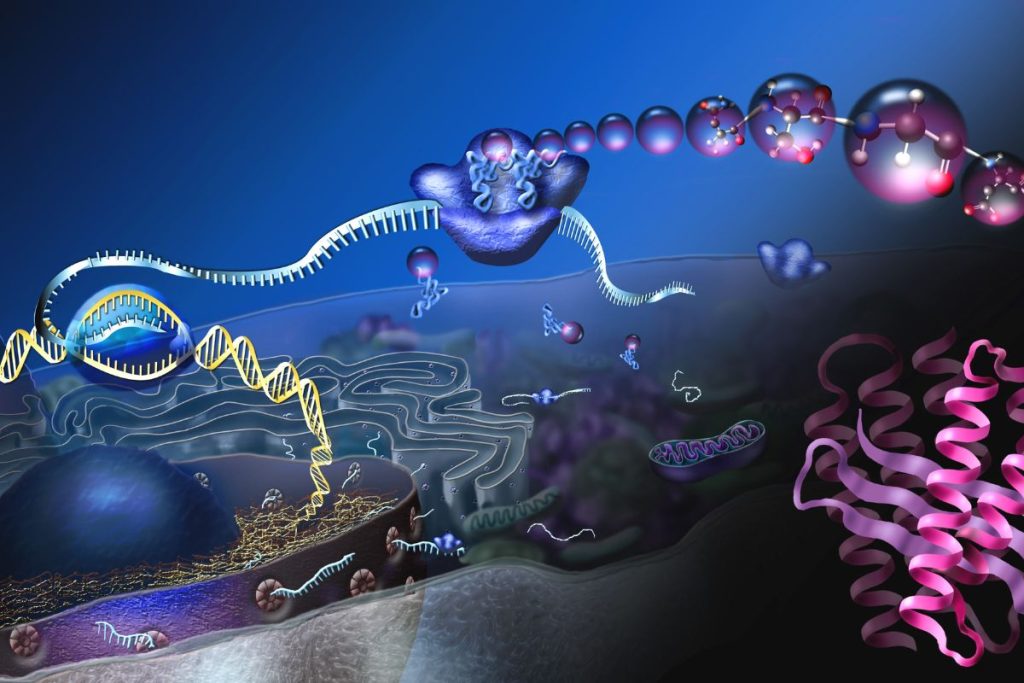
В каждой живой клетке без остановки работает самая точная молекулярная фабрика на планете. Генетическая информация, записанная в ДНК, превращается в реальные белки - ферменты, катализирующие реакции, структурные элементы цитоскелета, сигнальные молекулы и антитела. Этот процесс, биосинтез белка, происходит в несколько четко скоординированных этапов и отличается у прокариот и эукариот. Короче говоря, сначала информация переписывается с ДНК на мРНК во время транскрипции, а затем рибосомы считывают эту мРНК и собирают аминокислоты в полипептидную цепь во время трансляции. Далее проходят созревание, транспорт и посттрансляционные модификации, которые придают белку окончательной формы и функции.
Процесс не простой линейной конвейерной линией. На каждом этапе работают механизмы контроля качества, proofreading и регуляции, позволяющие клетке быстро реагировать на изменения среды, избегать ошибок и экономить энергию. У бактерий происходит почти одновременно в цитоплазме, тогда как в клетках человека или растений ядерная мембрана разделяет транскрипцию и трансляцию в пространстве и времени. Именно эта разделенность открывает возможности для более сложной регулировки и альтернативного сплайсинга, благодаря которому один ген может кодировать десятки разных белков.
Белки составляют основу всего живого. Без чёткого биосинтеза не было бы ни движения мускул, ни иммунного ответа, ни фотосинтеза, ни репликации ДНК. Понимание этапов этого процесса объясняет не только фундаментальные механизмы жизни, но и лежит в основе современной медицины — от создания антибиотиков до разработки мРНК-вакцин.
Транскрипция: переписывание генетической информации из ДНК на РНК
Транскрипция – это первый и критически важный этап, во время которого фермент РНК-полимераза считывает последовательность нуклеотидов одной из цепей ДНК и синтезирует комплементарную молекулу РНК. Процесс происходит по принципу комплементарности: аденин парится с урацилом, тимин – с аденином, гуанин – с цитозином. В результате образуется пре-мРНК (у эукариот) или непосредственно мРНК (у прокариот).
Инициация транскрипции
Все начинается с того, что РНК-полимераза вместе со специфическими факторами распознает промотор – особый участок ДНК перед геном. У бактерий ключевую роль играет сигма-фактор, помогающий ферменту найти правильное место. В эукариотических клетках ситуация значительно сложнее: нужны общие транскрипционные факторы (TFIIA, TFIIB, TFIID и другие), которые собираются на промоторе, в частности, на TATA-боксе. После формирования преинициационного комплекса РНК-полимераза II (у эукариот) или основная РНК-полимераза (у прокариот) начинает синтезировать первые нуклеотиды. Этот момент требует энергии и точного позиционирования во избежание старта с неправильного места.
Элонгация цепи РНК
Как только инициация завершена, РНК-полимераза переходит в режим элонгации. Она двигается вдоль ДНК в направлении 5'→3' синтезированной РНК, расплетая двойную спираль ДНК и добавляя нуклеотиды из нуклеозидтрифосфатов. Скорость поражает: у микробов фермент может преодолевать до 50–100 нуклеотидов в секунду. Во время движения образуется транскрипционный «пузырь» – короткий участок, где ДНК расплетается. Важно, что синтез всегда идет в одном направлении, а матрицей служит антисмысловая цепь ДНК.
Терминация транскрипции
Когда РНК-полимераза достигает терминаторной последовательности, процесс останавливается. У прокариот существуют два основных механизма: rho-зависимый (белок Rho «догоняет» полимеразу и заставляет ее отпасть) и rho-независимый (образование шпильки в РНК, дестабилизирующей комплекс). В эукариотах терминация связана с сигналом полиаденилирования (AATAAA) и последующим разрезанием транскрипта. После отсоединения РНК-полимераза может быть использована повторно или подвергнута деградации.
Транскрипция – это не просто механическое копирование. Она является точкой первого уровня регуляции экспрессии генов. Клетка может усиливать или ослаблять транскрипцию некоторых генов в зависимости от потребностей, используя репрессоры, активаторы и эпигенетические модификации хроматина.
Процесс мРНК у эукариот: созревание молекулярного посланника
В клетках с ядром транскрипт не сразу готов к работе. ПремРНК проходит сложный процессинг, который происходит частично еще во время транскрипции (ко-транскрипционно). Эти модификации защищают молекулу, помогают ей выйти из ядра и обеспечивают эффективную трансляцию.
Кепывание 5′-конца
Сразу после начала синтеза к 5′-концу пре-мРНК присоединяется модифицированный гуанозин (7-метилгуанозин) через 5′-5′-трифосфатную связь. Этот «кеп» защищает молекулу от деградации экзонуклеазами, способствует экспорту из ядра и является точкой узнавания рибосомы при инициации трансляции у эукариот. Без кепа мРНК быстро разрушается в цитоплазме.
Сплайсинг интронов
Гены эукариот содержат интроны – некодирующие последовательности, которые нужно удалить. Сплайсосома (комплекс малых ядерных РНК и белков) точно вырезает интроны и соединяет экзоны. Альтернативный сплайсинг позволяет с одной пре-мРНК получать разные варианты мРНК, а следовательно – разные изоформы белка. Это один из самых мощных механизмов увеличения протеомного разнообразия без увеличения количества генов.
Полиаденилирование 3′-конца
После разрезания транскрипта к 3′-концу добавляется «хвост» из 100–250 остатков аденина. Поли(A)-хвост защищает мРНК от деградации, способствует экспорту из ядра и влияет на эффективность трансляции. Длина хвоста регулируется и уменьшается с течением времени жизни молекулы в цитоплазме.
Эти три процесса вместе превращают нестабильный первичный транскрипт в зрелую мРНК, готовую к путешествию в цитоплазму.
Транспорт мРНК и подготовка к трансляции
Зрелая мРНК у эукариот должна покинуть ядро через ядерные поры. Этот транспорт осуществляется с помощью экспортинов и других транспортных белков, которые узнают кэп и поле(A)-хвост. В цитоплазме связывается мРНК с рибосомами и инициирует трансляцию. У прокариот такого транспорта нет — транскрипция и трансляция происходят практически одновременно, и рибосомы могут начинать синтез белка еще до завершения транскрипции гена.
Трансляция: сбор полипептидной цепи на рибосоме
Трансляция – это сердце биосинтеза белка. Здесь три типа РНК (мРНК, тРНК и рРНК) работают вместе, чтобы превратить нуклеотидную последовательность в аминокислотную. Рибосома действует как молекулярная машина, а тРНК – как адаптеры, доставляющие правильные аминокислоты.
Активация аминокислот и зарядка тРНК
Прежде чем аминокислота попадет на рибосому, она должна быть активирована. Аминоацил-тРНК-синтетазы (специфические для каждой аминокислоты) присоединяют аминокислоту к соответствующей тРНК за счет энергии АТФ. Этот этап включает в себя proofreading: если присоединилась неправильная аминокислота, фермент может ее гидролизовать. Таким образом, уже на этом уровне достигается высокая точность.
Инициация трансляции
У прокариот мала субъединица рибосомы (30S) связывается с мРНК благодаря Shine-Dalgarno-последовательности, расположенной перед старт-кодоном AUG. Инициаторная тРНК (fMet-tRNA) занимает P-сайт. Затем присоединяется большая субъединица (50S). У эукариот процесс более сложный: 40S субъединица вместе с инициаторной тРНК и многочисленными eIF-факторами сканирует мРНК от кепа до первого AUG в соответствующем контексте (Kozak-последовательность). После узнавания старт-кодона присоединяется 60S субъединица. Энергия поступает от гидролиза ГТФ.
Элонгация: наращивание цепи
После инициации рибосома двигается вдоль мРНК кодона за кодоном. На A-сайт входит аминоацил-тРНК, комплементарный кодону мРНК. Если соответствие правильно, происходит гидролиз ГТФ фактором элонгации (EF-Tu у прокариот или eEF1A у эукариот) и тРНК переходит в P-сайт. Пептидилтрансферазный центр (каталитическая рРНК крупной субъединицы) переносит пептидную цепь с P-сайта на аминокислоту в A-сайте, образуя новую пептидную связь. Затем рибосома транслокируется на один кодон благодаря фактору EF-G (или eEF2) и гидролизу ГТФ. На этом этапе также работает кинетический proofreading, снижающий частоту ошибок до примерно одной на 10 000 аминокислот.
Терминация и освобождение готового белка
Когда рибосома достигает стоп-кодона (UAA, UAG или UGA), на A-сайт входят факторы терминации (RF1/RF2 у прокариот или eRF1 у эукариот). Они имитируют тРНК и запускают гидролиз пептидной цепи от тРНК в P-сайте. Затем рибосома диссоциирует на субъединице с участием факторов рециклинга. Готовый полипептид высвобождается в цитоплазму или направляется в эндоплазматический ретикулум для дальнейшей обработки.
Каждая молекула белка – это результат тысяч точных молекулярных движений, где энергия АТФ и ГТФ расходуется с поразительной эффективностью.
Посттрансляционные модификации и сворачивание белков
Только синтезированный полипептид редко является функциональным сразу. Он проходит свертывание с помощью шаперонов (Hsp70, Hsp90, GroEL/GroES у бактерий), которые помогают избежать неправильной агрегации. Многие белки получают ковалентные модификации: фосфорилирование (регуляция активности), гликозилирование (особенно секреторные белки и мембранные рецепторы), ацетилирование, убиктинирование (маркировка на деградацию), образование дисульфидных мостиков. Сигнальные пептиды часто отщепляются. Эти модификации определяют локализацию белка в клетке, его стабильность и взаимодействие с другими молекулами.
Различия между прокариотами и эукариотами
Самое яркое отличие – наличие ядра у эукариот, разделяющее транскрипцию и трансляцию. У бактерий эти процессы могут быть соединены: рибосомы начинают трансляцию еще до завершения транскрипции. Прокариотические мРНК часто полицистроны (кодируют несколько белков из одного транскрипта), тогда как эукариотические обычно моноцистроны. Рибосомы отличаются размером (70S vs 80S) и чувствительностью к антибиотикам. Инициация у эукариот зависит от кепа, у прокариот — от Shine-Dalgarno-последовательности. Эти отличия имеют практическое значение: многие антибиотики избирательно блокируют бактериальную трансляцию, не затрагивая человеческие рибосомы.
| Этап / Характеристика | Прокариоты | Эукариоты |
|---|---|---|
| Место транскрипции | Цитоплазма | ядро |
| Процесс мРНК | Минимальный или отсутствует | Кепирование, сплайсинг, полиаденилирование |
| Инициация трансляции | Shine-Dalgarno + fMet-tRNA | Кэп-зависимое сканирование + Met-tRNA |
| Скорость элонгации | До 20 аминокислот/сек | 5–10 аминокислот/сек |
| Тип мРНК | Часто полицистронная | Обычно моноцистронная |
Данные обобщены из сравнительных обзоров молекулярной биологии (по состоянию на 2025–2026 гг.).
Регуляция биосинтеза белка на разных уровнях
Клетка не синтезирует все белки сразу. Регуляция происходит на уровне транскрипции (факторы транскрипции, эпигенетика), процессинга (альтернативный сплайсинг), стабильности мРНК (микроРНК, РНК-связывающие белки), инициации трансляции (фосфорилирование факторов eIF) и деградации белков (убиквитин-про. Нonsense-mediated decay уничтожает мРНК с преждевременными стоп-кодонами. Эти механизмы позволяют клетке экономить ресурсы и быстро адаптироваться.
Интересные факты об этапах биосинтеза белка
В бактериальной клеточке может сразу работать до 20 000 рибосом, любая из которых синтезирует белок со скоростью до 20 аминокислот в секунду. Это позволяет популяции бактерий удваиваться каждые 20–30 минут при благоприятных условиях.
Частота ошибок при трансляции составляет примерно 1 на 10 000 аминокислот благодаря двойному proofreading — на уровне аминоацил-тРНК-синтетаз и на уровне рибосомы (кинетический proofreading). Без этих механизмов большинство белков было бы нефункциональным.
Рибосома – это рибозим: каталитическую роль в образовании пептидной связи выполняет рРНК большой субъединицы, а не белки. Это одно из самых ярких доказательств древнего мира СНК.
Многие классические антибиотики (тетрациклин, эритромицин, стрептомицин) избирательно блокируют конкретные этапы трансляции у бактерий, не влияя существенно на эукариотические рибосомы. Именно поэтому они неопасны для человека.
мРНК-вакцины против COVID-19 и других инфекций работают именно благодаря трансляции: синтетическая мРНК попадает в цитоплазму клеток и рибосомы производят вирусный антиген, запуская иммунный ответ. Это прямой пример практического использования механизмов биосинтеза белка в медицине 2020-х годов.
В одной человеческой клетке синтезируется от нескольких тысяч до сотен тысяч разных белковых молекул ежедневно, а общее количество рибосом в большой клетке может достигать миллионов.
Понимание этих этапов открывает двери в новые технологии. Современная синтетическая биология использует знания о промоторах, рибосомных сайтах связывания и факторах элонгации для создания искусственных генетических цепей с предполагаемым поведением. Исследование рибосомных болезней (рибосомопатии) показывает, как мутации в компонентах трансляционного аппарата приводят к конкретным патологиям. А разработка препаратов, модулирующих трансляцию (например, для лечения рака или нейродегенеративных заболеваний), продолжается.
Каждая новая деталь, которую открывает наука о биосинтезе белка, лишь подчеркивает утонченность и надежность этой эволюционирующей в течение миллиардов лет системы. От простой бактерии до сложного многоклеточного организма – везде работает один и тот же фундаментальный принцип: точное считывание информации и ее воплощение в трехмерные функциональные структуры. Этот процесс продолжает удивлять и вдохновлять исследователей в 2026 году.